- 移动端

武汉华美生物工程有限公司CUSABIO®品牌商
15 年
手机商铺
- NaN
- 0
- 0
- 2
- 2
推荐产品


公司新闻/正文
TLR家族: 先天免疫哨兵的两面性与成药挑战
3 人阅读发布时间:2026-11-04 14:20
2026年,口服TLR7/8小分子抑制剂enpatoran的WILLOW II期临床研究结果先后发表于《柳叶刀》系列期刊。针对中度至重度系统性红斑狼疮(SLE)的Cohort B研究未达到主要终点,而针对皮肤受累患者的Cohort A研究则取得积极结果 [1,2]。两项研究的不同结果提示,TLR7/8靶向治疗的临床获益可能受到患者特征及疗效评价终点等因素影响,也再次引发了对TLR信号调控的思考:作为先天免疫系统的哨兵,TLR既参与病原体识别与免疫防御,其异常或持续激活也可能推动炎症反应和自身免疫疾病的发生发展。
自1996年发现果蝇Toll的免疫功能、1998年人源TLR4被鉴定为脂多糖(LPS)受体以来,TLR家族已从模式识别受体的基础研究对象,发展为疫苗佐剂、自身免疫病和肿瘤免疫等领域的重要研究靶点。本文将围绕TLR家族的结构机制与疾病关联,从细胞膜TLR、内体TLR、孤儿受体争议及靶向药物研发等方面,梳理其研究进展与转化前景。
人类TLR家族包含TLR1–TLR10共10个成员,小鼠则具有TLR1–TLR9及TLR11–TLR13共12个成员。两物种的TLR家族存在一定的同源关系,但部分成员在基因组成、配体识别及生理功能方面存在物种差异 [3]。所有TLR共享相同的结构域架构:N端富含亮氨酸重复序列(LRR)胞外域负责配体识别,单次跨膜α螺旋连接胞内TIR结构域(Toll/Interleukin-1 Receptor domain),后者介导下游信号转导 [19]。
|
|
|
|
|
|
|
|---|---|---|---|---|---|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
TLR最核心的分类维度是亚细胞定位——这直接决定了它们识别什么配体、采用什么二聚化模式、激活什么信号通路:
从识别对象看,TLR可识别病原体相关分子模式(PAMP),如细菌脂多糖(LPS)和病毒核酸;也可参与识别部分损伤相关分子模式(DAMP),如自身核酸和HMGB1等。这使TLR不仅参与抗感染免疫,也与无菌性炎症和自身免疫等过程相关。需要注意的是,部分蛋白类DAMP是否直接结合并激活TLR仍存在争议 [19]。图1汇总了TLR家族对病原体及宿主来源分子模式的识别。
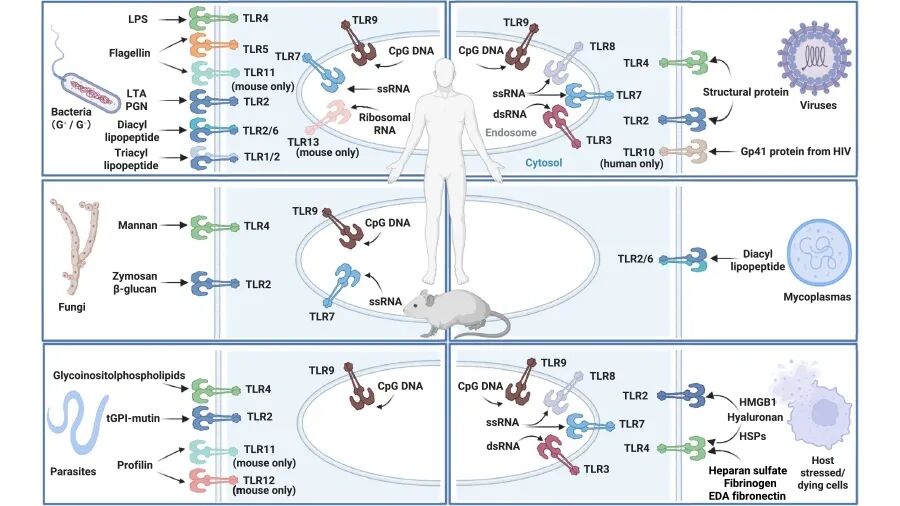
图1:TLR家族对PAMPs与DAMPs的识别
来源:Qian C, et al. Immun Inflamm. 2026. DOI:10.1007/s44466-026-00040-6
进化上,TLR可追溯至远古真核生物的先天免疫防线:果蝇仅存少数Toll样基因,脊椎动物则在基因组倍增事件中扩张至10–13个家族成员 [4]。值得注意的是,人与小鼠的TLR家族组成存在双向物种差异:TLR10在小鼠基因组中为假基因(丧失功能),而小鼠特有的TLR11、TLR12、TLR13在人类中则不表达功能性对应成员。这使得TLR10研究长期依赖人源细胞系或恒河猴模型,其生物学角色至今仍存争议。
尽管定位与配体各不相同,TLR的信号转导共享统一的架构:配体诱导胞外域二聚化后,胞内TIR结构域成为信号组装平台。除TLR3外,所有TLR均可招募MyD88,经IRAK4/IRAK1与TRAF6组装成被称为"myddosome"的超分子组织中心(supramolecular organizing center,SMOC);TLR3则直接招募TRIF,与TLR4经内体转运后形成的分支共同组装"triffosome",激活TBK1–IRF3轴诱导I型干扰素 [20]。SMOC概念的深层意义在于,TLR信号并非线性的激酶级联,而是在特定时空组装成的"信号细胞器"——这种模块化组装解释了为何单个TLR的激活能在数分钟内协调多种炎症基因的协同转录。
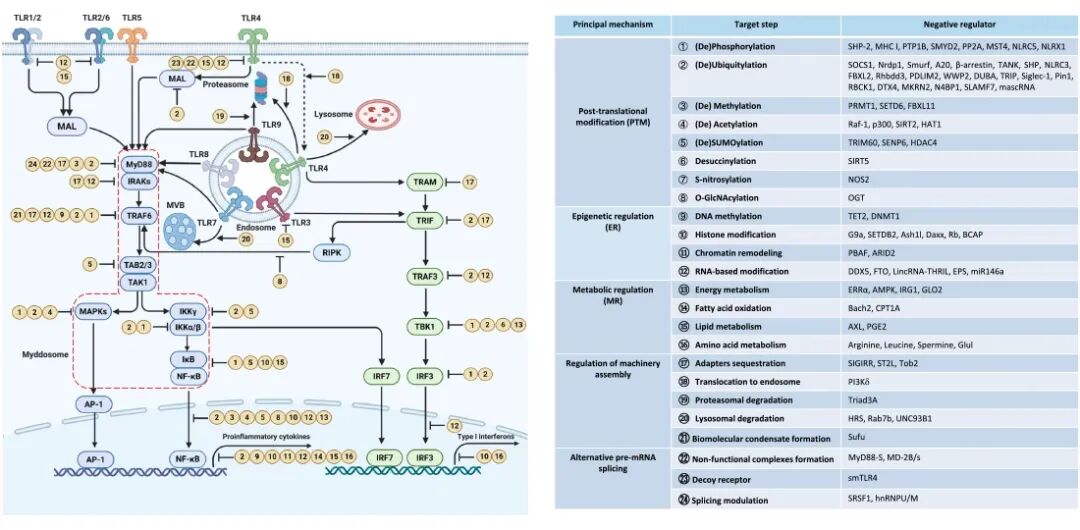
图2:TLR信号通路与负调控机制
来源:Qian C, et al. Immun Inflamm. 2026. DOI:10.1007/s44466-026-00040-6
TLR4
TLR4是研究最深入的TLR家族成员,也是唯--一需要MD-2共受体才能完成激活的TLR。这一独特设计源自其配体——脂多糖(LPS),即革兰氏阴性菌外膜的主要成分,由高度保守的脂质A和变异性的寡糖链组成。2009年Nature解析的TLR4/MD-2/LPS复合物晶体结构明确了其激活机制:MD-2以β-桶折叠形式与TLR4胞外域形成1:1复合物,脂质A的六条疏水酰基链中,五条被MD-2的疏水口袋完全包裹,第六条(2-N位二级酰基链)暴露于MD-2表面并锚定在TLR4-MD-2二聚界面 [5]。两个TLR4-MD-2复合物在脂质A的桥接作用下组装成活化的同源四聚体([TLR4/MD-2/LPS]₂),其胞内TIR结构域随之重排,招募MyD88或TRIF依赖的信号通路。
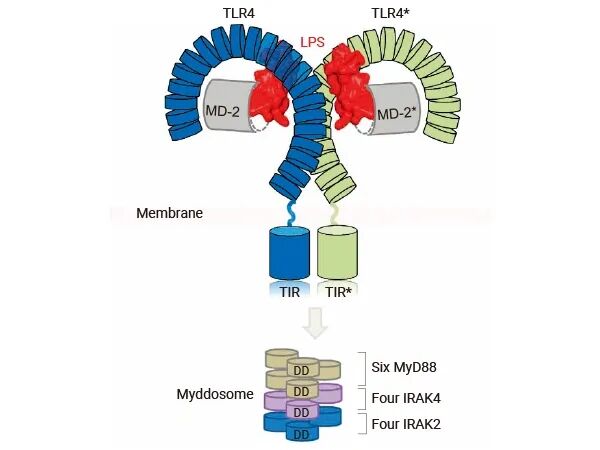
图3:LPS与TLR4–MD-2复合物的识别及受体二聚化
来源:Park B S, Lee J O. Exp Mol Med. 2013. DOI:10.1038/emm.2013.97
在疾病关联方面,TLR4是革兰氏阴性菌脓毒症中LPS识别与炎症启动的关键受体:LPS经TLR4激活NF-κB和MAPK通路,促炎细胞因子大量释放 [6]。但脓毒症本质上是宿主对感染的反应失调综合征,涉及TLR2、TLR9、NLRP3等多种模式识别受体以及多细胞、多因子的网络失衡,不能简单归因于TLR4的单一作用。在类风湿性关节炎(RA)中,滑膜局部的TLR2/4共同感知滑膜液中的肽聚糖和HMGB1(DAMP),维持慢性炎症微环境。
TLR4的临床转化经历了多次挫折与策略调整。早期候选药物Eritoran和NI-0101分别在脓毒症III期和类风湿关节炎(RA)II期临床试验中未达到预期疗效 [7,23]。此后,NI-0101(后续开发代号EB05)转向急性呼吸窘迫综合征(ARDS),其III期研究于2025年公布积极结果,并于2026年披露了更大患者群体的补充数据。
与此同时,TLR4激动剂G-100探索了滤泡性淋巴瘤等肿瘤免疫治疗,TLR4拮抗剂ApTOLL则推进至急性缺血性卒中的Ib/IIa期临床研究。
这些进展表明,TLR4的临床开发并非简单地从“阻断炎症”转向“激活免疫”,而是逐渐围绕不同疾病机制、病程阶段和治疗目标,探索更具针对性的激活或阻断策略。
TLR1/2/6
TLR2通过与TLR1或TLR6形成异源二聚体,识别细菌和真菌表面的脂肽与脂磷壁酸。TLR1/2二聚体偏好三酰化脂肽,而TLR2/6二聚体仅对二酰化配体响应,这一差异由两个受体胞外域的疏水口袋结构决定 [8]。这种异源二聚化策略赋予TLR2极宽的配体谱,但也增加了药物设计的难度——靶点选择性取决于对特定二聚体的亲和力而非对单个受体的亲和力。
值得关注的是,TLR2方向的临床转化正在稳步推进:CADI 05(Immuvac)作为TLR2激动剂已于印度获批用于麻风治疗;TR-987(TLR2调节剂)在慢性静脉溃疡的III期临床中取得积极结果;TARA-002(TLR2/NOD2双靶点激动剂)用于膀胱癌的III期试验也在进行中。此外,TLR2激动剂作为疫苗佐剂和肿瘤免疫疗法的探索也在持续开展。
TLR5
TLR5是TLR家族中唯---一识别鞭毛蛋白的成员。与其他细胞膜TLR的异源二聚化模式不同,TLR5以同源二聚体形式结合鞭毛蛋白中部的保守结构域。除了在系统性感染中起作用外,TLR5还承担着肠屏障稳态的关键职责:肠道上皮细胞的TLR5感知腔内共生菌的鞭毛蛋白,分泌黏液和抗菌肽维持共生平衡。
尽管TLR5的生物学研究起步较晚,其临床转化却在稳步推进:Entolimod(鞭毛蛋白衍生物)作为TLR5激动剂,已进入III期临床用于急性放射综合征;另有Mobilan(前列腺癌,II期)和MRx-518(尿路感染、乳腺癌,II期)等管线在不同适应症上探索。
内体TLR的配体全部是核酸,这带来一个关键问题:如何避免误识别自身细胞的RNA和DNA?答案是定位隔离——内体是细胞消化吞噬内容物的场所,只有被内吞进入的外源核酸(病毒颗粒、凋亡细胞碎片)才会暴露给内体TLR。新合成的内体TLR在内质网中结合Unc93B1分子伴侣,经囊泡运输至内体膜,这条运输通路本身就是活性调控的重要节点 [9]。
TLR3
TLR3是TLR家族中唯---一走TRIF依赖通路的成员。它识别dsRNA——主要是病毒复制的中间产物;在细胞凋亡或坏死等特定条件下释放的自身dsRNA也可能被TLR3识别,但这一途径的生理病理意义仍在研究中。与MyD88依赖的NF-κB激活不同,TRIF通路主要经TBK1–IRF3轴诱导I型干扰素,在抗病毒防御中发挥核心作用。
由于其对dsRNA的高亲和力,TLR3激动剂(如poly-ICLC、rintatolimod、BO-112)已被开发为肿瘤免疫佐剂——通过模拟病毒感染激活树突状细胞,增强抗原呈递 [10]。另一方面,TLR3拮抗剂方向也值得关注:Janssen的CNTO-3157(TLR3单抗)目前在哮喘适应症上开展II期临床,提示阻断TLR3对自身dsRNA的过度识别可能在呼吸道疾病中具有治疗价值。但与之相对,TLR3对自身dsRNA的识别也可能参与部分自身免疫病的炎症过程,其确切贡献仍有争议。
TLR7/8
TLR7和TLR8是结构相近的内体TLR,均可识别RNA相关配体,但在静息状态下的构象及配体识别机制上存在差异:TLR8预先形成同源二聚体,但其胞外域尚未处于活化构象;TLR7则以非活化单体形式存在,需在配体结合后形成活化二聚体 [20]。这些差异影响了两种受体的配体识别与激活方式。
TLR7采用“双口袋”配体识别机制:一个口袋结合鸟苷,另一个口袋结合富含尿苷的短RNA片段,两者协同激活受体 [11]。咪唑喹----啉类小分子激动剂(如咪喹莫特)可通过直接结合TLR7发挥激动作用。Bérouti等人的研究进一步揭示,内体中的RNase T2与PLD3/4核酸外切酶协同处理RNA,生成可激活TLR7的鸟苷及尿苷富集RNA片段 [12]。
TLR8同样依赖内体RNA降解产物,但其配体识别机制与TLR7并不完全相同。
TLR8可识别RNA降解产生的寡核苷酸片段及小分子核苷,二者协同促进受体活化 [24]。与TLR7相比,TLR8在人类单核细胞、髓系树突状细胞等髓系免疫细胞中具有重要作用,参与促炎细胞因子产生和先天免疫应答。因此,TLR7与TLR8虽共享部分配体识别特征,但其细胞分布及免疫调控作用并不相同。
在系统性红斑狼疮(SLE)中,自身核酸及其免疫复合物可被免疫细胞摄取,并激活相关核酸感知通路。TLR7介导的自身RNA识别与自身反应性B细胞活化及I型干扰素反应密切相关 [13];TLR8则可能通过髓系细胞的炎症反应参与疾病调控,其作用需结合具体细胞类型和疾病背景分析。基于两种受体在自身免疫中的潜在作用,TLR7/8双靶点抑制剂成为药物研发的重要方向。
TLR9
TLR9识别非甲基化的CpG DNA序列——这种序列在细菌基因组中大量存在,而哺乳动物DNA的CpG岛则被高度甲基化。在SLE中,TLR9的作用比TLR7/8更为复杂:在浆细胞样树突状细胞(pDC)中,TLR9识别自身DNA-免疫复合物可促进IFN-α产生;但在B细胞中,TLR9信号可限制自身反应性B细胞的存活,在部分狼疮小鼠模型中甚至抑制TLR7介导的病理进展。因此,TLR9在SLE中并非单纯的促炎受体,其作用具有明显的细胞依赖性。TLR9相关机制已在疫苗佐剂领域实现临床转化。例如,乙肝疫苗Heplisav-B采用CpG 1018作为佐剂,通过刺激先天免疫反应增强疫苗免疫原性。
前面讨论的TLR大多有明确的配体、通路与疾病指向,但家族中总有成员不按这套规则出牌:TLR10至今没有公认的配体,训练免疫让TLR的作用超出了"瞬时炎症应答"的时间尺度,而肿瘤微环境中的TLR则同时呈现激活与抑制两种相反的面孔。这三个"例外"恰恰是当前TLR研究争议最集中、也最可能孕育新范式的方向。
TLR10
TLR10通常被视为TLR家族中的“孤儿受体”,其天然配体及生理功能尚未得到一致确认。现有研究提示,TLR10可与MyD88相互作用,并可能通过与其他TLR形成同源或异源复合物调节下游信号;但其具体效应受细胞类型、亚细胞定位及实验体系等因素影响,既有研究报道了抗炎作用,也发现了促炎相关效应 [14,15]。例如,有研究报道TLR10可识别HIV-1包膜蛋白gp41,并增强HIV-1感染 [21];另有研究发现,TLR10参与人中性粒细胞的趋化调控 [22]。此外,TLR10既可定位于细胞表面,也可分布于内体等胞内区室,其定位调控及相关功能仍有待进一步阐明 [16]。由于小鼠TLR10基因存在逆转座元件插入,缺乏天然表达功能性TLR10的常规小鼠模型,这也增加了其体内生理功能研究的难度。
2025年的一篇综述系统梳理了TLR10的表达、亚细胞定位及功能研究进展,并指出,TLR10基因多态性与哮喘、系统性红斑狼疮(SLE)等疾病的关联已有报道,但相关机制及因果关系仍需进一步研究 [14]。尽管TLR10早在20多年前便已被发现,其天然配体、信号调控机制及疾病相关功能仍存在诸多未解问题,是TLR家族中值得持续关注的研究方向之一。
2011年提出的"训练免疫"(trained immunity)概念,描述了先天免疫系统在首次暴露于病原体或PAMP后获得的一种非特异性"记忆"能力——再次面对异源刺激时,先天免疫细胞的应答能力显著增强。TLR是训练免疫的重要诱导受体之一:LPS经TLR4、β-葡聚糖经dectin-1均可诱导骨髓单核细胞的表观遗传重塑。经典的卡介苗(BCG)训练免疫则主要依赖NOD2介导的H3K4me3、H3K27ac修饰,训练后的细胞对LPS、酵母聚糖等异源配体的NF-κB和IL-1β应答显著增强 [17]。
这一发现拓展了TLR的生物学角色:它们不仅是瞬时的信号传导节点,还能通过表观遗传修饰塑造先天免疫系统的长期应答潜能。基于这一机制,将TLR激动剂纳入疫苗佐剂设计以诱导训练免疫的策略已进入临床前评估阶段,其在预防感染等方向的转化潜力仍在验证中。
TLR激动剂作为肿瘤佐剂的逻辑清晰——激活树突状细胞,交叉呈递肿瘤抗原。但TLR在肿瘤微环境中的角色远比这复杂:
-
持续激活可诱导免疫抑制:肿瘤微环境中的DAMP及其他炎症信号可通过不同受体和通路影响免疫细胞功能。在部分肿瘤模型中,持续的炎症信号可能促进免疫抑制性细胞群形成;但其具体效应取决于肿瘤类型、受体表达和微环境条件。 -
TLR7的细胞依赖性:在肿瘤细胞中,TLR7过表达可促进肿瘤生长;而在髓系细胞中,TLR7激动剂又能增强抗肿瘤免疫。这种细胞依赖性使其成药难度显著增加 [20]。
TLR靶向策略已在局部免疫治疗和疫苗佐剂等领域实现临床应用,但不同靶点的研发成熟度差异较大,许多新型激动剂和抑制剂仍处于临床研究阶段。关键限制在于:绝大多数TLR激动剂的治疗窗口极窄,适度激活可产生治疗效果,过度激活则可能诱发细胞因子风暴;而拮抗剂则面临"抑制过度导致感染风险升高"的两难。
已上市药物
|
|
|
|
|
|
|---|---|---|---|---|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
代表性临床管线
|
|
|
|
|
|
|---|---|---|---|---|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
下一代方向
随着结构生物学与受体组装机制研究的深入,TLR 靶向策略正在向更精细的层面延伸:
TLR4/MD-2 的结构研究不仅揭示了脂质 A 的识别方式,也为配体改造提供了依据。Eritoran 即为基于脂质 A 结构设计的拮抗剂,可占据 MD-2 的疏水口袋,但不能诱导活性 TLR4/MD-2 复合物二聚化。尽管其具有明确的结构与药理学依据,Eritoran 在脓毒症 III 期临床试验中仍未显示显著获益。这提示,配体与受体结合并不必然带来预期的功能调控或临床疗效。TLR7 的双配体结合位点机制也为理解配体识别和探索选择性小分子设计提供了线索,但其能否转化为更好的选择性和体内活性,仍需进一步验证。
结构研究已揭示 MyD88 及相关衔接蛋白 TIR 结构域的组装机制 [18],为干预 TLR 信号传导提供了潜在靶点。由于多个 TLR 共享 MyD88 依赖的信号通路,靶向该节点有望影响多种 TLR 介导的应答,但也可能影响正常的先天免疫功能。如何有效干预 TIR 结构域介导的蛋白相互作用,并兼顾靶向性与安全性,仍是该方向需要解决的问题。
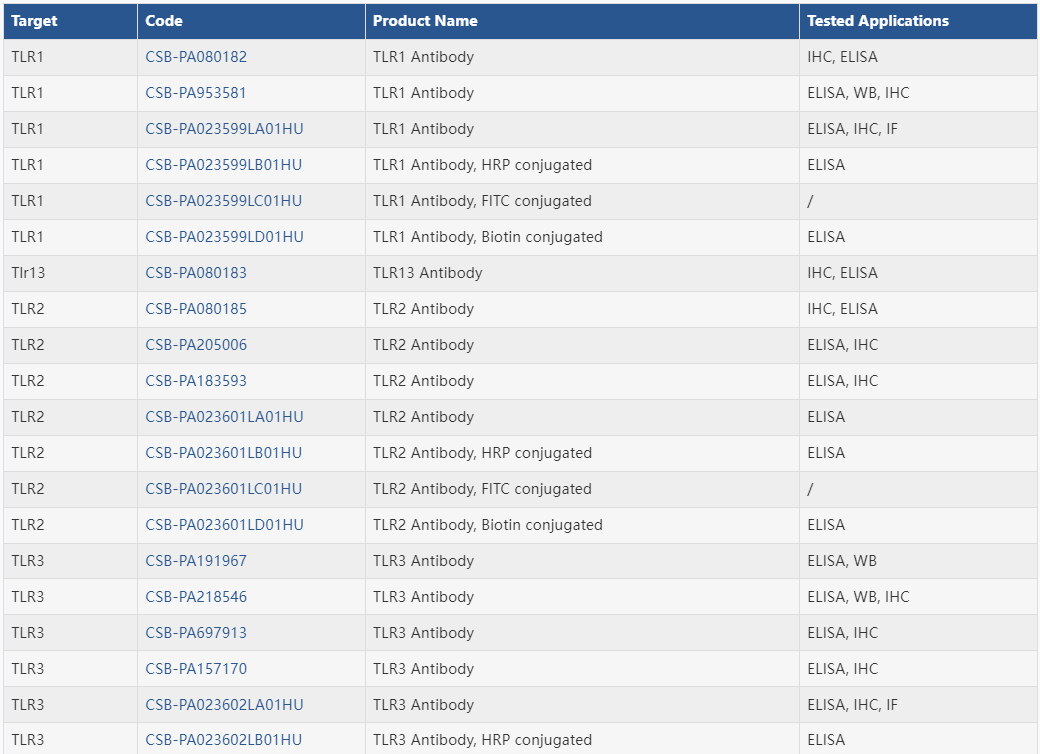
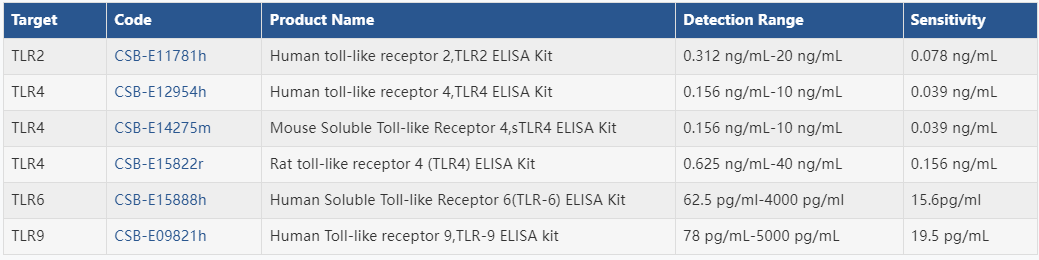
为支持TLR家族相关研究,华美生物提供以下重组蛋白、ELISA试剂盒及抗体产品,覆盖TLR1–TLR10等核心靶点:
● 重组蛋白
|
|
|
|
|
|---|---|---|---|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
● 抗体
重组抗体
|
|
|
|
|
|---|---|---|---|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
|
多克隆抗体
● ELISA试剂盒
参考文献:
[1]Morand E F, Pearson D R, Roy S, et al. Enpatoran, a Toll-like receptor 7/8 inhibitor, in moderate-to-severe systemic lupus erythematosus: findings from Cohort B of a multicentre, international, double-blind, placebo-controlled dose-finding phase 2 trial. Lancet. 2026;407 (10541):1809-1824.
[2] Morand E F, Werth V P, Wenzel J, et al. Efficacy and safety of enpatoran, a Toll-like receptor 7/8 inhibitor, in patients with skin manifestations of cutaneous lupus erythematosus or systemic lupus erythematosus: findings from Cohort A of a multicentre, international, double-blind, placebo-controlled, dose-finding phase 2 trial. Lancet Rheumatol. 2026;8 (7):e513-e527.[3] Kumar H, Kawai T, Akira S. Toll-like receptors and innate immunity. Biochem Biophys Res Commun. 2009;388 (4):621-5.
[4] Leulier F, Lemaitre B, et al. Toll-like receptors--taking an evolutionary approach. Nat Rev Genet. 2008;9 (3):165-78.
[5] Park BS,Song DH,Kim HM, et al. The structural basis of lipopolysaccharide recognition by the TLR4-MD-2 complex. Nature. 2009;458 (7242):1191-5.
[6] Gerber-Tichet E,Blanchet FP,Majzoub K, et al. Toll-like receptor 4 - a multifunctional virus recognition receptor. Trends Microbiol. 2025;33 (1):34-47.[7] Opal S M, Francois B, LaRosa S P, et al. Effect of eritoran, an antagonist of MD2-TLR4, on mortality in patients with severe sepsis: the ACCESS randomized trial. JAMA. 2013;309 (11):1154-62.
[8] Kang J Y, Nan X, Jin M S, et al. Recognition of lipopeptide patterns by Toll-like receptor 2-Toll-like receptor 6 heterodimer. Immunity. 2009;31 (6):873-84.
[9] Kim YM,Brinkmann MM,Paquet ME, et al. UNC93B1 delivers nucleotide-sensing toll-like receptors to endolysosomes. Nature. 2008;452 (7184):234-8.
[10] Kanzler H, Barrat F J, Hessel E M, et al. Therapeutic targeting of innate immunity with Toll-like receptor agonists and antagonists. Nat Med. 2007;13 (5):552-9.
[11] Lund J M, Alexopoulou L, Sato A, et al. Recognition of single-stranded RNA viruses by Toll-like receptor 7. Proc Natl Acad Sci U S A. 2004;101 (15):5598-603.
[12] Bérouti M, Lammens K, Heiss M, et al. Lysosomal endonuclease RNase T2 and PLD exonucleases cooperatively generate RNA ligands for TLR7 activation. Immunity. 2024;57 (7):1482-1496.e8.
[13] Fillatreau S, Manfroi B, Dörner T. Toll-like receptor signalling in B cells during systemic lupus erythematosus. Nat Rev Rheumatol. 2021;17 (2):98-108.
[14] Riva F, Riva F, Muzio M, et al. Updates on Toll-Like Receptor 10 Research. Eur J Immunol. 2025;55 (5):e202551840.
[15] Hasan U, Chaffois C, Gaillard C, et al. Human TLR10 is a functional receptor, expressed by B cells and plasmacytoid dendritic cells, which activates gene transcription through MyD88. J Immunol. 2005;174 (5):2942-50.
[16] Lee S M, Yip T F, Yan S, et al. Recognition of Double-Stranded RNA and Regulation of Interferon Pathway by Toll-Like Receptor 10. Front Immunol. 2018;9:516.
[17] Netea M G, Domínguez-Andrés J, Barreiro L B, et al. Defining trained immunity and its role in health and disease. Nat Rev Immunol. 2020;20 (6):375-388.
[18] Clabbers MTB,Holmes S,Flueckiger L, et al. MyD88 TIR domain higher-order assembly interactions revealed by microcrystal electron diffraction and serial femtosecond crystallography. Nat Commun. 2021;12 (1):2578.
[19] Qian C, Cao X, Hoffmann J A, et al. Toll-like receptors in innate immunity and inflammation: from fundamental biology to clinic insights. Immun Inflamm. 2026;2 (1):22.
[20] Fitzgerald K A, Kagan J C. Toll-like receptors and the control of immunity. Cell. 2020;180(6):1044-1066.
[21] Henrick B M, Yao X D, Zahoor M A, et al. TLR10 Senses HIV-1 Proteins and Significantly Enhances HIV-1 Infection. Front Immunol. 2019;10:482.
[22] Balachandran Y, Caldwell S, Aulakh G K, et al. Regulation of TLR10 Expression and Its Role in Chemotaxis of Human Neutrophils. J Innate Immun. 2022;14 (6):629-642.
[23] Monnet E, Choy E H, McInnes I, et al. Efficacy and safety of NI-0101, an anti-toll-like receptor 4 monoclonal antibody, in patients with rheumatoid arthritis after inadequate response to methotrexate: a phase II study. Ann Rheum Dis. 2020;79 (3):316-323.
[24] Tanji H, Ohto U, Shibata T, et al. Toll-like receptor 8 senses degradation products of single-stranded RNA. Nat Struct Mol Biol. 2015;22 (2):109-15.